La scarsità d’acqua è uno dei principali fattori di stress per le piante e rappresenta un problema sempre più rilevante per l’agricoltura. Quando l’acqua disponibile nel terreno diminuisce, infatti, la pianta non si limita semplicemente a crescere meno: modifica profondamente il proprio metabolismo, regola gli scambi gassosi, altera l’equilibrio osmotico delle cellule e attiva numerosi sistemi di protezione.
Alcune di queste risposte sono visibili solo quando lo stress è già avanzato, come l’appassimento, la riduzione della crescita o la perdita di produttività. Molte altre, invece, avvengono molto prima e possono essere individuate soltanto attraverso l’analisi di specifici parametri biochimici.
Tra questi, la prolina, la malondialdeide (MDA) e l’attività degli enzimi antiossidanti permettono di ottenere informazioni importanti sul modo in cui una pianta sta reagendo alla ridotta disponibilità d’acqua.
Nel recente studio Experimental evaluation of microbial inoculants to enhance growth, reproductive output, stress tolerance, and defense in Opuntia ficus-indica (pubblicato qui) realizzato insieme a Domenico Prisa e Aftab Jamal, abbiamo valutato proprio questi parametri, cercando di comprendere se l’inoculazione con microrganismi benefici potesse modificare la risposta fisiologica del fico d’India durante un prolungato deficit idrico. Lo studio ha analizzato non soltanto la crescita e la produzione di fiori e frutti, ma anche alcuni meccanismi legati all’equilibrio osmotico e allo stress ossidativo.
Quando l’acqua diventa difficile da assorbire
Per una pianta, disporre di acqua non significa semplicemente avere del terreno umido intorno alle radici. L’acqua deve poter essere assorbita e trasferita attraverso i tessuti fino alle cellule, dove partecipa a numerosi processi metabolici e contribuisce al mantenimento del turgore.
Quando il terreno si asciuga, il suo potenziale idrico diminuisce e diventa progressivamente più difficile per le radici assorbire acqua. La pianta reagisce modificando il proprio metabolismo e attivando una serie di risposte che hanno lo scopo di limitare le perdite e mantenere il funzionamento cellulare.
Una delle conseguenze del deficit idrico può essere l’aumento della produzione delle cosiddette specie reattive dell’ossigeno, indicate generalmente con l’acronimo ROS (Reactive Oxygen Species). Tra queste troviamo, per esempio, l’anione superossido e il perossido di idrogeno.
Le ROS non sono necessariamente dannose. In concentrazioni controllate partecipano anche ai normali processi di segnalazione cellulare. Il problema nasce quando la loro produzione supera la capacità della pianta di neutralizzarle. In questo caso può instaurarsi uno stress ossidativo, con possibili danni a proteine, membrane cellulari e altri componenti della cellula. Lo stesso articolo scientifico richiama proprio l’aumento delle ROS, la perossidazione dei lipidi e l’accumulo di osmoprotettori tra le principali risposte delle piante al deficit idrico.
La pianta deve quindi affrontare contemporaneamente due problemi: mantenere un adeguato equilibrio idrico e limitare i danni provocati dallo stress ossidativo. È in questo contesto che diventano particolarmente interessanti prolina, MDA ed enzimi antiossidanti.
La prolina e l’equilibrio osmotico
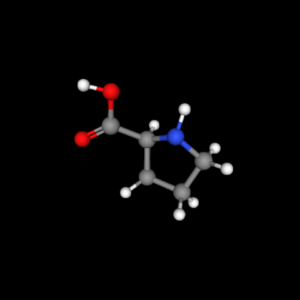
Struttura chimica della prolina
La prolina è un amminoacido normalmente presente nelle cellule vegetali, ma in molte specie la sua concentrazione aumenta in risposta a stress come siccità, salinità e basse temperature.
In queste condizioni la prolina può comportarsi come un osmolita compatibile, cioè una piccola molecola solubile che può accumularsi nel citoplasma senza interferire significativamente con le normali reazioni cellulari. Il suo accumulo contribuisce a ridurre il potenziale osmotico della cellula e può quindi favorire il mantenimento dell’acqua e del turgore cellulare anche quando l’ambiente esterno diventa più secco.
La funzione della prolina, però, non si limita all’aggiustamento osmotico. Numerosi studi le attribuiscono anche un ruolo nella stabilizzazione di proteine e membrane, nel controllo dello stato redox e nei sistemi di segnalazione legati allo stress.
È importante, tuttavia, non interpretare automaticamente un aumento della prolina come sinonimo di maggiore resistenza alla siccità. La relazione è più complessa e dipende dalla specie, dall’intensità dello stress e dal contesto sperimentale. La prolina può rappresentare sia una risposta adattativa sia, in alcune condizioni, un indicatore dell’intensità dello stress stesso. Una recente revisione ha sottolineato proprio la necessità di interpretarne la concentrazione insieme ad altri parametri fisiologici e biochimici.
Nel nostro studio la prolina è stata estratta da 0,5 g di tessuto fresco dei cladodi di Opuntia (le pale di fico d’India) mediante acido solfosalicilico al 3% e successivamente quantificata utilizzando una curva standard di L-prolina.
Le piante del controllo presentavano una concentrazione media di 2,1 ± 0,15 µmol per grammo di peso fresco, mentre quelle trattate con il consorzio completo di microrganismi raggiungevano 3,9 ± 0,18 µmol/g.
Il valore osservato nel consorzio corrisponde quindi a un aumento di circa l’86% rispetto al controllo. Da solo, questo dato indica una diversa risposta metabolica al deficit idrico; il suo significato diventa però molto più interessante quando viene confrontato con gli indicatori di danno ossidativo.
Un’indicatore del danno alle membrane
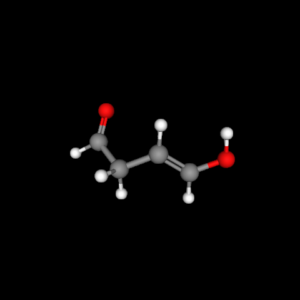
La molecola della malondialdeide
Uno degli effetti dello stress ossidativo è la perossidazione lipidica, cioè l’ossidazione degli acidi grassi polinsaturi presenti nelle membrane cellulari.
Durante questo processo si formano diversi prodotti secondari, tra cui la malondialdeide, normalmente indicata con la sigla MDA. Per questo motivo la quantità di MDA presente nei tessuti vegetali viene frequentemente utilizzata come indicatore del livello di perossidazione lipidica.
La relazione è abbastanza intuitiva: quando l’ossidazione dei lipidi aumenta, tende ad aumentare anche la quantità di MDA rilevabile nei tessuti. La MDA non rappresenta quindi genericamente “lo stress della pianta”, ma fornisce informazioni più specifiche sul danno ossidativo che ha interessato le membrane. In fisiologia vegetale è uno dei marker più utilizzati proprio per questo scopo.
Nel nostro lavoro la MDA è stata determinata attraverso il saggio con acido tiobarbiturico, o TBA, una tecnica spettrofotometrica comunemente utilizzata per la valutazione della perossidazione lipidica.
Le piante non inoculate mostravano una concentrazione media di 15,4 ± 0,25 nmol/g di peso fresco. Nel trattamento con il consorzio microbico completo il valore scendeva a 10,1 ± 0,22 nmol/g, con una riduzione di circa il 34%.
Questo risultato completa in parte quanto osservato con la prolina. Nelle piante inoculate non troviamo soltanto una maggiore attivazione di una risposta associata all’aggiustamento osmotico, ma anche una minore quantità di un prodotto legato alla perossidazione delle membrane.
Rimane però da comprendere come la pianta riesca a mantenere più basso il danno ossidativo. Una parte della risposta passa attraverso il sistema antiossidante.
Gli enzimi antiossidanti
Le cellule vegetali possiedono numerosi sistemi in grado di controllare le specie reattive dell’ossigeno. Alcuni sono costituiti da molecole antiossidanti non enzimatiche, altri da veri e propri enzimi capaci di trasformare le ROS in composti meno reattivi.
Tra questi enzimi troviamo la superossido dismutasi, indicata come SOD e la catalasi, CAT.
Questi enzimi fanno parte di una rete molto ampia che permette alla cellula di mantenere sotto controllo il proprio equilibrio ossido-riduttivo.
Nel nostro esperimento gli enzimi sono stati estratti da 0,5 g di tessuto fresco omogeneizzato in tampone fosfato mantenuto a bassa temperatura. L’attività della SOD è stata valutata attraverso un metodo basato sulla riduzione del nitroblue tetrazolium, mentre l’attività della catalasi è stata determinata seguendo la decomposizione del perossido di idrogeno.
L’attività della superossido dismutasi passa da 85 ± 4,2 U/mg di proteina nel controllo a 120 ± 4,8 U/mg nel consorzio microbico, con un aumento di circa il 41%. Per la catalasi si passa invece da 42 ± 2,6 U/mg a 63 ± 3,2 U/mg, con un incremento del 50%.
Anche in questo caso il dato non deve essere interpretato isolatamente. Un aumento dell’attività antiossidante può essere parte della risposta stessa allo stress. Tuttavia, nel nostro esperimento, l’aumento di SOD e CAT avviene contemporaneamente alla diminuzione dell’MDA. In altre parole, le piante inoculate mostrano una maggiore attività degli enzimi deputati al controllo delle ROS e, nello stesso tempo, un livello inferiore di perossidazione lipidica.
Lo studio sul fico d’India
La specie utilizzata nell’esperimento è stata Opuntia ficus-indica, una pianta CAM naturalmente adattata ad ambienti caratterizzati da elevata disponibilità luminosa e limitata presenza di acqua.
Le piante sono state coltivate in serra per 180 giorni. Dopo un periodo iniziale di acclimatazione di 30 giorni, il contenuto idrico del terreno è stato mantenuto intorno al 50% della capacità di campo per i successivi 150 giorni. L’umidità è stata controllata gravimetricamente, pesando periodicamente i vasi e reintegrando la quantità d’acqua necessaria a mantenere uniforme il livello stabilito.
Sono stati confrontati sei trattamenti: un controllo non inoculato, un trattamento con PGPR, uno con funghi micorrizici arbuscolari, uno con actinomiceti, la combinazione PGPR + AMF e infine un consorzio comprendente tutti e tre i gruppi microbici.
Si tratta di microrganismi con funzioni biologiche differenti. I PGPR possono influenzare la crescita radicale e la disponibilità di nutrienti; i funghi micorrizici arbuscolari estendono attraverso le proprie ife il volume di terreno esplorato dalle radici e favoriscono soprattutto l’acquisizione di nutrienti poco mobili come il fosforo; diversi Streptomyces sono invece noti per la produzione di metaboliti biologicamente attivi e per le interazioni con altri microrganismi della rizosfera.
Il nostro studio non ha identificato un singolo meccanismo molecolare attraverso cui questi microrganismi abbiano determinato le variazioni osservate nella prolina o negli enzimi antiossidanti. Quello che emerge è piuttosto una risposta fisiologica complessiva associata all’inoculazione, particolarmente evidente nel trattamento costituito dal consorzio completo.
Microrganismi e risposta allo stress
Nelle piante trattate con il consorzio microbico completo la concentrazione di prolina aumenta di circa l’86%, l’attività della SOD di circa il 41% e quella della CAT del 50%, mentre il contenuto di MDA diminuisce di circa il 34% rispetto al controllo.
Questo significa che, nelle condizioni sperimentali utilizzate, le piante inoculate hanno mostrato contemporaneamente una maggiore risposta associata all’aggiustamento osmotico, una maggiore attività degli enzimi antiossidanti e una minore perossidazione lipidica.
Lo stesso trattamento è anche quello che ha prodotto i migliori risultati per diversi parametri di crescita e produttività. La biomassa aerea è passata da 230 g nel controllo a 340 g nel consorzio e quella radicale da 90 a 160 g. Anche la produzione di frutti è aumentata da 1,61 a 2,43 kg per pianta.
Il dato importante, quindi, non riguarda soltanto una modificazione biochimica isolata. Gli indicatori fisiologici si inseriscono in un quadro più generale in cui le piante inoculate mantengono prestazioni vegetative e riproduttive migliori rispetto alle piante non inoculate sottoposte alla stessa disponibilità idrica.
Questo risultato è coerente con numerosi studi che mostrano come i microrganismi benefici possano influenzare la risposta delle piante alla siccità attraverso meccanismi diversi, tra cui regolazione osmotica, attività antiossidante, modificazioni ormonali e miglioramento della nutrizione minerale.
Conclusioni
Lo stress idrico non è un fenomeno che può essere descritto soltanto osservando quanto cresce una pianta. La risposta alla scarsità d’acqua coinvolge l’equilibrio osmotico, il metabolismo cellulare, la produzione di specie reattive dell’ossigeno e i sistemi utilizzati per limitarne gli effetti.
Prolina, MDA ed enzimi antiossidanti rappresentano quindi tre punti di osservazione diversi dello stesso fenomeno. La prolina permette di studiare una parte della risposta osmotica e metabolica; la MDA fornisce informazioni sulla perossidazione dei lipidi di membrana; SOD e CAT mostrano quanto sia attivo il sistema enzimatico deputato al controllo delle specie reattive dell’ossigeno.
Nel nostro studio, l’inoculazione con microrganismi benefici, e in particolare l’impiego del consorzio formato da PGPR, funghi micorrizici e actinomiceti, ha modificato tutti questi parametri nella stessa direzione: maggiore accumulo di prolina, maggiore attività antiossidante e minore perossidazione lipidica.
Il risultato suggerisce che il rapporto tra pianta e microrganismi della rizosfera non riguarda esclusivamente l’assorbimento dei nutrienti o la crescita radicale, ma può riflettersi anche su processi metabolici che avvengono nei tessuti della parte aerea e che partecipano alla risposta allo stress.
Comprendere queste relazioni significa quindi considerare la pianta non più come un organismo isolato, ma come parte di un sistema biologico più complesso nel quale radici, suolo e microrganismi contribuiscono insieme alla capacità di adattarsi alle condizioni ambientali.
Bibliografia essenziale
Attanasio F., Jamal A., Prisa D. Experimental evaluation of microbial inoculants to enhance growth, reproductive output, stress tolerance, and defense in Opuntia ficus-indica. Multidisciplinary Science Journal, pubblicato online il 10 settembre 2026. DOI 10.31893/multiscience.2027325.
Hayat S. et al. (2012). Role of proline under changing environments: a review. Plant Signaling & Behavior, 7, 1456–1466.
Verslues P.E., Sharma S. (2010). Proline metabolism and its implications for plant-environment interaction. The Arabidopsis Book.
Morales M., Munné-Bosch S. (2024). Malondialdehyde Assays in Higher Plants. Methods in Molecular Biology, 2798, 79–100.
Laxa M. et al. (2019). The Role of the Plant Antioxidant System in Drought Tolerance. Antioxidants, 8, 94.